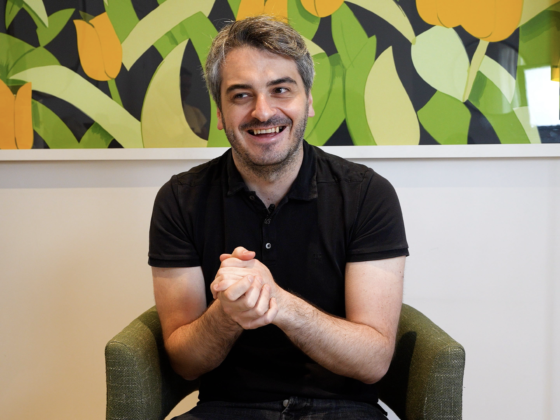
Le Pr Jean-Marc Lemaître, directeur de recherche à l’Inserm et expert mondial de la reprogrammation cellulaire, Marc Bessoles, entrepreneur et Paul Ben Sadoun Ingénieur de recherche à l’Inserm ont cofondé Skinomix.ai pour traduire la biologie de précision en soins cosmétiques personnalisés grâce à l’IA et à la multi-omique.
L’analyse multi-omique conjuguée à l’intelligence artificielle redessine les contours d’une cosmétique de précision, individuelle et prédictive.
Pendant des décennies, la cosmétique a misé sur des promesses universelles. Aujourd’hui, l’analyse multi-omique conjuguée à l’intelligence artificielle ouvre la voie à une beauté de précision : lire la biologie unique de chaque peau pour orienter vers le soin le plus adapté.
LA FIN DE LA COSMÉTIQUE « MOYENNE »
Le vieillissement cutané n’obéit à aucune règle universelle. Deux peaux du même âge chronologique peuvent affi cher des âges biologiques distincts, parfois séparés de plus d’une décennie [3]. Cette hétérogénéité est le reflet de l’expression différentielle des hallmarks du vieillissement, dont la cartographie de référence, établie par López-Otín et collaborateurs [4], fait aujourd’hui consensus au sein de la communauté scientifique. Pourtant, l’industrie cosmétique a longtemps conçu ses produits pour une forme de « peau moyenne » : un modèle standardisé, construit à partir de cohortes hétérogènes, qui tend à gommer les écarts génétiques, métaboliques et environnementaux, l’exposome cutané, faisant de chaque épiderme une signature biologique unique.
Comme la médecine est entrée dans l’ère de la médecine personnalisée grâce aux outils moléculaires à haut débit, la cosmétique peut aujourd’hui franchir un seuil comparable : celui d’une cosmétique personnalisée, fondée sur la lecture biologique fine de chaque peau et sur l’orientation vers les soins les plus adaptés à ses besoins propres.
MULTI-OMIQUE : LIRE LE LANGAGE MOLÉCULAIRE DE LA PEAU
L’approche multi-omique consiste à analyser simultanément plusieurs couches d’information biologique. La génomique identifie les variants associés, par exemple, à la pigmentation, à la production de collagène ou à la sensibilité au stress oxydatif. L’épigénomique, elle, ne modifie pas la séquence de l’ADN, mais étudie les marques chimiques déposées sur l’ADN ou autour de lui, notamment la méthylation de l’ADN et les modifications des histones. Ces marques agissent comme un véritable chef d’orchestre : elles ne changent pas la partition génétique, mais modulent la manière dont elle est interprétée par les cellules. Elles constituent ainsi un code biologique à part entière, au-delà du code génétique, capable d’activer, de freiner ou de silencier l’expression de certains gènes.
C’est précisément la lecture de ces modifications épigénétiques, en particulier des profils de méthylation de l’ADN, qui a permis le développement des horloges épigénétiques, dont Horvath et Hannum figurent parmi les pionniers [1,2]. Ces outils permettent aujourd’hui d’estimer l’âge biologique d’un individu ou d’un tissu. La transcriptomique mesure l’expression effective des gènes au sein des cellules et des tissus : elle indique quels gènes sont réellement actifs à un instant donné. La protéomique quantifie les protéines produites, collagènes, élastines, enzymes, cytokines, qui constituent l’expression fonctionnelle finale de l’information codée par les gènes. La métabolomique révèle l’état énergétique et biochimique des cellules, notamment la disponibilité en NAD+, marqueur central du vieillissement biologique. À ces dimensions s’ajoute le microbiome cutané, dont l’équilibre module l’immunité locale, la barrière hydrolipidique et la réponse inflammatoire [6].
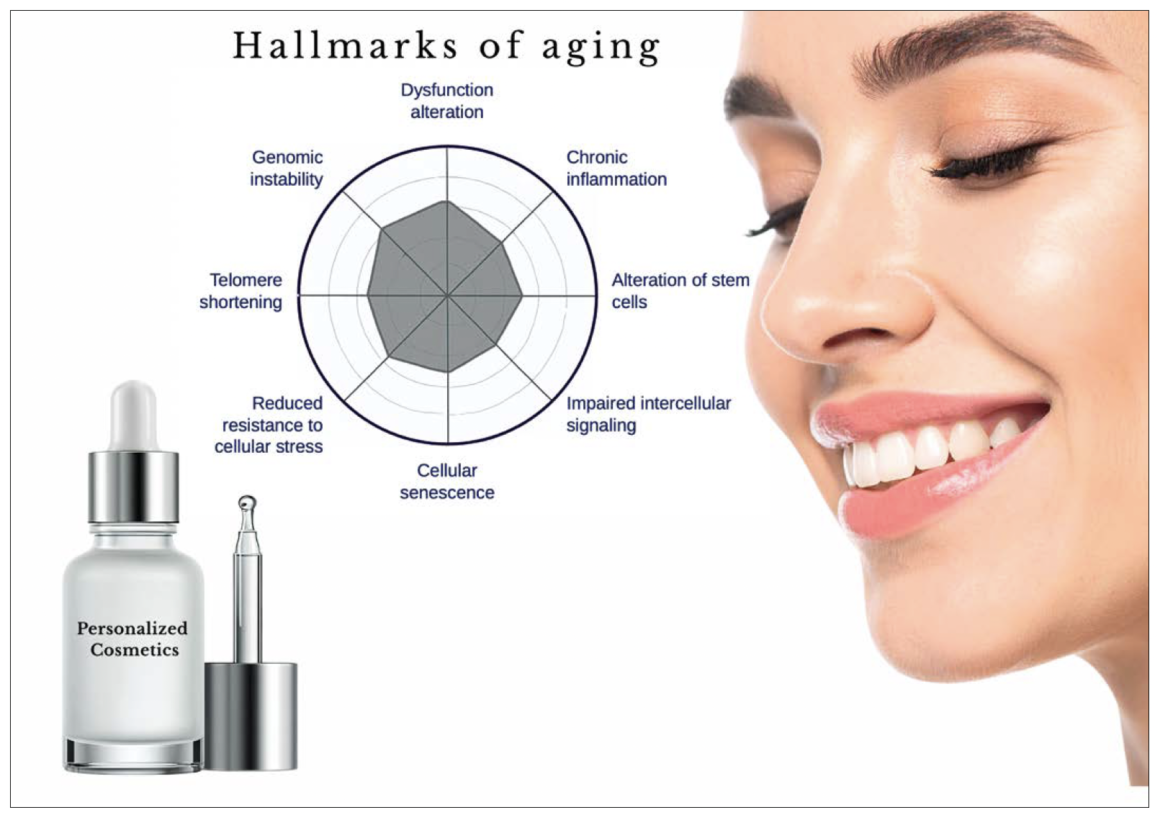
Aucune de ces couches ne permet, à elle seule, de dresser l’état moléculaire complet du vieillissement d’un tissu chez un individu biologiquement singulier, dans toute la diversité de ses dimensions biologiques. C’est leur intégration qui révèle les leviers biologiques réellement actifs dans le vieillissement cutané. Une dysbiose ne peut être comprise sans le terrain génétique, immunitaire et inflammatoire qui la sous-tend ; un déficit énergétique cellulaire ne prend sens qu’à la lumière du contexte transcriptionnel, protéique et métabolique dans lequel il s’inscrit. Grâce aux technologies actuelles, ces différentes dimensions peuvent désormais être mesurées dans des tissus complexes comme la peau, jusqu’à l’échelle de la cellule unique [11].
Cette résolution révèle une hétérogénéité longtemps invisible : chaque individu est biologiquement unique, mais, au sein même d’un individu, chaque population cellulaire, kératinocytes, fibroblastes, cellules immunitaires, possède aussi sa propre dynamique moléculaire. La peau apparaît ainsi non comme un tissu uniforme, mais comme un écosystème vivant, dont la lecture fine ouvre la voie à une cosmétique véritablement personnalisée.
L’INTELLIGENCE ARTIFICIELLE, TRADUCTRICE DES DONNÉES BIOLOGIQUES
Une analyse multi-omique peut générer des centaines de milliers de variables par individu, jusqu’à près d’un million pour certaines couches épigénétiques, notamment lorsque l’on analyse la méthylation de l’ADN. Aucune lecture humaine ne peut, à elle seule, extraire de cette complexité des recommandations biologiquement pertinentes. L’intelligence artificielle, et en particulier les modèles d’apprentissage profond entraînés sur des cohortes croisant phénotypes cutanés et données moléculaires, permet de franchir ce seuil. Elle hiérarchise les biomarqueurs, identifie ceux qui permettent d’estimer l’âge biologique d’un individu, puis met en évidence les voies du vieillissement les plus altérées chez ce profil donné. Elle permet ainsi de repérer les voies de signalisation prioritaires à moduler et d’orienter le choix vers les combinaisons d’actifs les plus cohérentes avec le profil biologique observé. Les modèles génératifs ouvrent également l’exploration d’espaces chimiques difficilement accessibles aux approches empiriques, en optimisant simultanément effi cacité, tolérance cutanée et empreinte environnementale. Validées sur des modèles avancés de peau humaine reconstituée, ces approches atteignent un degré de spécificité que la cosmétique conventionnelle n’avait jamais permis. Cette boucle de données biologiques, interprétation algorithmique, validation expérimentale dessine la nouvelle architecture R&D de la cosmétique personnalisée.
HORIZONS 2030 : LA PEAU PRÉDITE AVANT D’ÊTRE RÉPARÉE
Trois ruptures majeures se dessinent. D’abord, le passage d’une cosmétique réparatrice à une cosmétique prédictive : grâce aux horloges moléculaire, il deviendra possible d’anticiper la trajectoire de vieillissement d’une peau et d’intervenir bien en amont des signes visibles. Ensuite, la formulation dynamique : les soins s’adapteront en temps réel à des paramètres biologiques mesurés au domicile par capteurs miniaturisés, applications de photométrie et tests épigénétiques périodiques. Enfin, la convergence avec la médecine de la longévité : sénolytiques topiques, reprogrammation partielle par exemple, dont la preuve de concept sur cellules humaines sénescentes et centenaires a été apportée par les travaux pionniers de l’équipe de recherche dirigé par le prof. Lemaître [8] et modulateurs de sirtuines feront s’estomper les frontières entre dermatologie, biotechnologies et cosmétique [9]. La beauté de précision n’est plus un horizon lointain : elle est l’application directe d’une science qui apprend, enfin, à respecter l’unicité biologique de chacun.
La cosmétique personnalisée n’est plus une promesse : elle est l’aboutissement d’une décennie de progrès en biologie des systèmes. En conjuguant multi-omique et intelligence artificielle, elle inaugure une ère où chaque soin devient la traduction biologique d’une singularité humaine.
Références :
[1] Horvath S. DNA methylation age of human tissues and cell types. Genome Biology, 2013; 14:R115.[2] Hannum G., Guinney J., Zhao L., Zhang L., Hughes G., Sadda S., et al. Genome-wide methylation pro les reveal quantitative views of human aging rates. Molecular Cell, 2013; 49:359-367.[3] Horvath S., Raj K. DNA methylation-based biomarkers and the epigenetic clock theory of ageing. Nature Reviews Genetics, 2018; 19:371-384.[4] López-Otín C., Blasco M.A., Partridge L., Serrano M., Kroemer G. Hallmarks of aging: An expanding universe. Cell, 2023; 186(2):243-278.[5] Levine M.E. et al. An epigenetic biomarker of aging for lifespan and healthspan. Aging, 2018; 10(4):573-591.[6] Byrd A.L., Belkaid Y., Segre J.A. The human skin microbiome. Nature Reviews Microbiology, 2018; 16:143-155.[7] Ocampo A. et al. In vivo amelioration of age-associated hallmarks by partial reprogramming. Cell, 2016; 167(7):1719-1733.[8] Lapasset L., Milhavet O., Prieur A., Besnard E., Babled A., Aït-Hamou N., Leschik J., Pellestor F., Ramirez J.M., De Vos J., Lehmann S., Lemaître J.M. Rejuvenating senescent and centenarian human cells by reprogramming through the pluripotent state.Genes & Development, 2011; 25(21):2248-2253.[9] Alle Q., Le Borgne E., Bensadoun P., Lemey C., Béchir N., Gabanou M., et al.A single short reprogramming early in life initiates and propagates an epigenetically related mechanism improving tness and promoting an increased healthy lifespan. Aging Cell. 2022;21:e13714.[10] Fuentealba M., Rouch L., Guyonnet S., Lemaitre JM., de Souto Barreto P., Vellas B., Andrieu S., Furman D. A blood-based epigenetic clock for intrinsic capacity predicts mortality and is associated with clinical, immunological and lifestyle factors. Nature Aging. 2025;5:1059-1077.[11] Lu WH., Guyonnet S., Raf n J., Bessou-Touya S., Ravard Helffer K., Bianchi P., Le Digabel J., Bensadoun P., Lemaitre JM., de Souto Barreto P., Vellas B., IHU HealthAge INSPIRE/Open Science study group. Associations of skin biomechanical properties with biological aging clocks and longitudinal changes in intrinsic capacity in adults aged 20–93: the INSPIRE-T project. Aging Cell. 2025.[12] Grande de França N., Rolland Y., Guyonnet S., Bensadoun P., Lemaitre JM., Vellas B., de Souto Barreto P., et al.The role of dietary patterns on epigenetic and in ammatory aging based on the INSPIRE-T study. Communications Medicine. 2026.[13] Turesson A., Koochek A., Nydahl M., Lemaitre JM., Bensadoun P., Martinez LO., Guyonnet S., Rolland Y., Vellas B., de Souto Barreto P., IHU HealthAge INSPIRE/Open Science group. The associations between biological markers of aging and appetite loss across adulthood: retrospective case-control data from the INSPIRE-T study. GeroScience. 2025.[14] Sánchez-Sánchez JL., Valenzuela PL., Bensadoun P., Lemaitre JM., Vellas B., de Souto Barreto P., et al.Biological ageing acceleration and functional capacities across the lifespan in the INSPIRE-T cohort.[15] Valenzuela PL., Sánchez-Sánchez JL., Bensadoun P., Lemaitre JM., Vellas B., Sourdet S., de Souto Barreto P. Cross-sectional associations of epigenetic clocks with intrinsic capacity and functional ability in older adults with frailty and cognitive impairment: the COGFRAIL study. GeroScience. 2026;48:973-984.[16] Valenzuela PL., Sánchez-Sánchez JL., Bensadoun P., Lemaitre JM., Furman D., Vellas B., Sourdet S., de Souto Barreto P. Cross-sectional and longitudinal associations of an in ammatory aging clock with intrinsic capacity and functional ability in older adults with physical and cognitive impairments: the COGFRAIL cohort. The Journals of Gerontology: Series A. 2026.[17] Tavassoli N., de Souto Barreto P., Berbon C., Mathieu C., de Kerimel J., Lafont C., et al.HealthAge: evaluation protocol and cohort pro le. GeroScience. 2025.